
Посмотрите на шмеля в клевере у тропы. Цветок неподвижен, а чтобы его пыльца добралась до другого цветка того же вида, нужен курьер. Насекомое летать умеет, но бесплатно работать не станет. Цветок платит нектаром и пыльцой, шмель разносит пыльцу — так это выглядит со стороны.
Только это не дружба, а рынок с несовпадающими интересами. Растению нужен аккуратный посетитель, который коснётся пыльников и не отвлечётся на соседний вид. Опылителю нужны калории как можно быстрее, и ему всё равно, чью пыльцу он несёт. Один цветок клевера отдаёт около двух микролитров нектара — миллиграмм сахара, 15 джоулей. Шмелю, который в полёте тратит десятые доли ватта, такой порции хватает на минуту.
И обе стороны жульничают. Шмель прокусывает венчик сбоку и выпивает нектар, не задев пыльников. Некоторые орхидеи не дают нектара вовсе — только обещают его формой и запахом. Ответ на вопрос заголовка: приспосабливаются оба, но несимметрично, и универсального направления нет.
Что сделать. Найдите цветок клевера с дырочкой у основания трубки — след шмеля-вора. Посчитайте, сколько секунд пчела сидит на одном цветке одуванчика: уйдёт она раньше, чем выпьет всё.
Почему нектар не делают сиропом. Казалось бы, цветку выгодно класть в нектар как можно больше сахара. Но густой раствор вязок, и пить его медленно. Скорость получения энергии — произведение концентрации на расход:

$$P(c)\propto c\cdot Q(c)$$
модель
Иначе говоря, энергии в капле тем больше, чем она слаще, но втянуть её тем труднее; максимум лежит посередине. Для тех, кто всасывает через хоботок, расход падает примерно как корень из вязкости, для тех, кто макает язык, — как корень шестой степени; отсюда оптимальные концентрации около 33 % для первых и около 50 % для вторых, и измеренный нектар ложится на эти числа1.

Когда улетать. Даже хороший цветок не стоит пить до дна: пока запас иссякает, скорость добычи падает, а перелёт к следующему цветку стоит времени. Уходить надо, когда мгновенная добыча упала до средней по полю. Это теорема Чарнова 1976 года о предельной ценности — и шмели ей следуют.
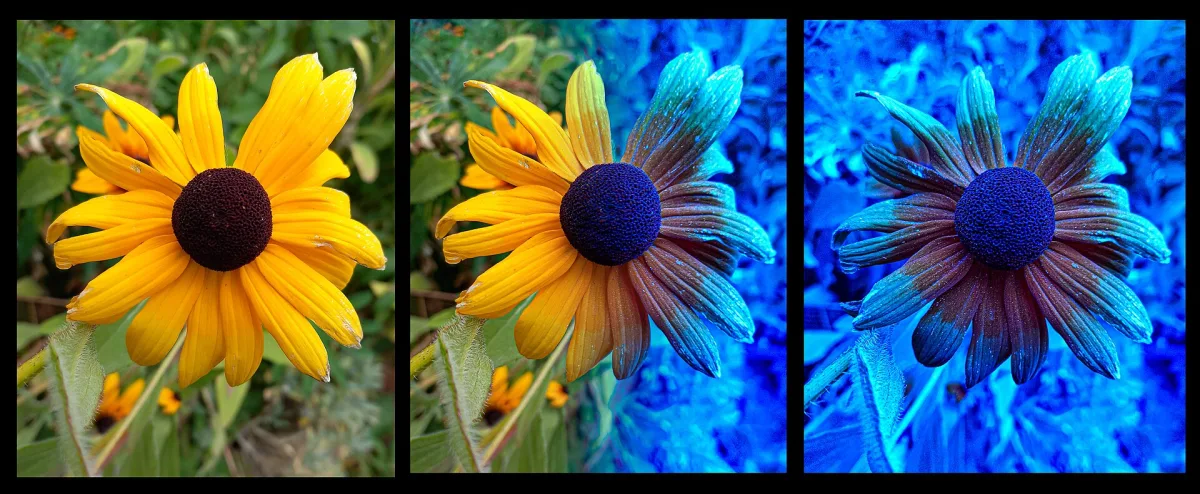
Как цветок рекламирует себя. Реклама сделана под глаз клиента, а не человека. У пчелы три типа рецепторов с максимумами в ультрафиолете, синем и зелёном, красного она почти не видит. На лепестках многих цветков есть ультрафиолетовый рисунок — «посадочные огни», сходящиеся к нектарнику. Запах работает иначе: ветер рвёт его шлейф на клочья, и бражник, потеряв след, летит поперёк ветра зигзагом, пока не наткнётся снова. Есть и совсем неожиданный канал: цветок несёт слабый отрицательный заряд, летящий шмель — положительный, и волоски на теле шмеля чувствуют это поле; насекомые учатся отличать по нему цветки, которые только что посетили.
Пыльцу надо положить точно. Пыльцевое зерно диаметром 30 микрометров весит около $10^{-10}$ ньютона — его держат на теле капиллярные силы, а не вес. Поэтому цветок задаёт посетителю позу: у шалфея пчела нажимает на тычинку как на рычаг, и та опускается ей на спину; у орхидей целые пакеты пыльцы приклеиваются к голове. У томата и черники пыльца вытряхивается только вибрацией: шмель обхватывает пыльник и жужжит на 300 герц, давая ускорение в десятки g. Медоносная пчела так не умеет, и в теплицах томаты опыляют шмелями.
Kim W., Gilet T., Bush J. W. M. Optimal concentrations in nectar feeding. PNAS 108:16618–16621, 2011; Rico-Guevara A., Rubega M. A. The hummingbird tongue is a fluid trap, not a capillary tube. PNAS 108:9356, 2011. ↩
Орхидея Дарвина. В 1862 году Дарвин описал мадагаскарскую орхидею с нектарным шпорцем длиной около 30 сантиметров и предсказал, что на острове живёт бабочка с хоботком такой же длины — иначе орхидее некому отдать пыльцу. Над ним смеялись; бражника с хоботком в 25–30 см нашли в 1903 году и назвали в честь предсказания — praedicta, «предсказанный». Это классический пример гонки: у южноафриканских длиннохоботковых мух и опыляемых ими растений длина хоботка и глубина трубки меняются согласованно от долины к долине — где мухи длиннее, там и цветки глубже1.
Почему обычно ответ «оба, но не поровну». Большинство цветков посещают десятки видов насекомых, и большинство насекомых кормятся на многих растениях. Сети «растение — опылитель», собранные по сотням сообществ, устроены вложенно: специалисты работают с теми же партнёрами, что и генералисты, а не с отдельным кругом. Оттого отбор несимметричен: для растения неудачный визит — потерянное семя, для насекомого — потерянная минута. Растение платит за ошибку дороже и меняется быстрее2.
Сколько это стоит. По глобальной оценке, животные-опылители повышают урожай примерно трёх четвертей из 115 основных сельскохозяйственных культур; на них приходится около трети объёма пищи — не по калориям, где главные злаки опыляются ветром, а по разнообразию: фрукты, овощи, орехи, масла3. Отсюда и цена шмеля в теплице: без вибрационного опыления томат не завязывается.
Как язык берёт нектар. Опылители пьют по-разному: бабочка и пчела тянут нектар по хоботку, как по трубке, а колибри и часть пчёл макают язык и вытаскивают его с плёнкой жидкости. Для трубки действует закон Пуазёйля — расход падает обратно вязкости, и густой сироп проигрывает сразу. Для макания работает другая физика — задача Ландау — Левича — Дерягина: на поверхности, которую вытягивают из жидкости со скоростью $U$, остаётся плёнка толщины
$$h \sim \ell_c\,\mathrm{Ca}^{2/3}, \qquad \mathrm{Ca} = \frac{\mu U}{\sigma}$$
модель
где $\mu$ — вязкость, $\sigma$ — поверхностное натяжение, $\ell_c$ — капиллярная длина. Иначе говоря, чем гуще нектар, тем толще плёнка на языке, и это отчасти окупает то, что густое течёт хуже: у макающих оптимум концентрации выше, чем у сосущих. Задачу решили в 1942 году Лев Ландау и Вениамин Левич для покрытия пластин, а Борис Дерягин довёл её до общего случая — и та же формула описывает язык колибри, окунание вафли в шоколад и нанесение фотоэмульсии на плёнку4.
Кто открыл. Что форма и окраска цветка адресованы насекомому, понял в 1793 году немецкий учитель Кристиан Конрад Шпренгель: он описал у цветов «путевые метки», сходящиеся к нектарнику, и доказал, что опыление ветром и опыление насекомыми — разные стратегии; современники его высмеяли, а Дарвин через семьдесят лет назвал книгу «Раскрытая тайна природы» одной из главных для себя. Ультрафиолетовые метки на лепестках, которых Шпренгель видеть не мог, открыли только в XX веке, когда выяснили, что пчёлы видят в ультрафиолете5.
О чём спорят. Можно ли по форме цветка предсказать его опылителя? Учебная идея «синдромов опыления» — красный трубчатый цветок для птиц, ночной белый для бражников — на проверке по 500 видам оправдалась лишь примерно в трети случаев: большинство цветков посещает не тот, для кого они «сделаны». Одни считают синдромы полезной подсказкой о главном опылителе, другие — красивым мифом6.
Открытый вопрос. Электрическое поле цветка меняется после визита шмеля — и следующий шмель это чувствует. Работает ли этот канал в поле, где ветер и дождь перезаряжают всё вокруг, или только в лаборатории, пока неизвестно: измерить заряд цветка на лугу трудно, а поведение шмеля с выключенным «электрическим зрением» — ещё труднее.
Anderson B., Johnson S. D. The geographical mosaic of coevolution in a plant–pollinator mutualism. Evolution 62:220–225, 2008; Darwin C. On the Various Contrivances by Which British and Foreign Orchids Are Fertilised by Insects, 1862. ↩
Bascompte J. et al. The nested assembly of plant–animal mutualistic networks. PNAS 100:9383–9387, 2003; Charnov E. L. Optimal foraging, the marginal value theorem. Theor. Popul. Biol. 9:129–136, 1976. ↩
Klein A.-M. et al. Importance of pollinators in changing landscapes for world crops. Proc. R. Soc. B 274:303–313, 2007; Vallejo-Marín M. Buzz pollination. New Phytologist 224:1068, 2019; Clarke D. et al. Detection and learning of floral electric fields by bumblebees. Science 340:66, 2013. ↩
Ландау Л. Д., Левич В. Г. Dragging of a liquid by a moving plate. Acta Physicochimica URSS 17:42–54, 1942; Богданов К. Ю. Физик в гостях у биолога. Библиотечка «Квант», вып. 49, 1986. ↩
Sprengel C. K. Das entdeckte Geheimniss der Natur im Bau und in der Befruchtung der Blumen. Berlin, 1793. ↩
Ollerton J. et al. A global test of the pollination syndrome hypothesis. Annals of Botany 103:1471–1480, 2009. ↩
 Научно-популярный туризм