Растение умеет удивительно многое: поднимать воду выше небоскрёба, зимовать в мерзлоте, жить на голой скале. Но физику оно не отменяет. Его форма и место на карте — решение нескольких неравенств, и каждое рисует свою границу.
Где. Верхняя и северная граница леса по всему миру проходит там, где средняя температура сезона роста около 6–7 °C: в Альпах, в Андах, на Урале, на Кольском. Выше и севернее дерево не успевает построить древесину за лето — и остаются стланик, травы и подушки, которые живут в тёплом слое у самой земли.
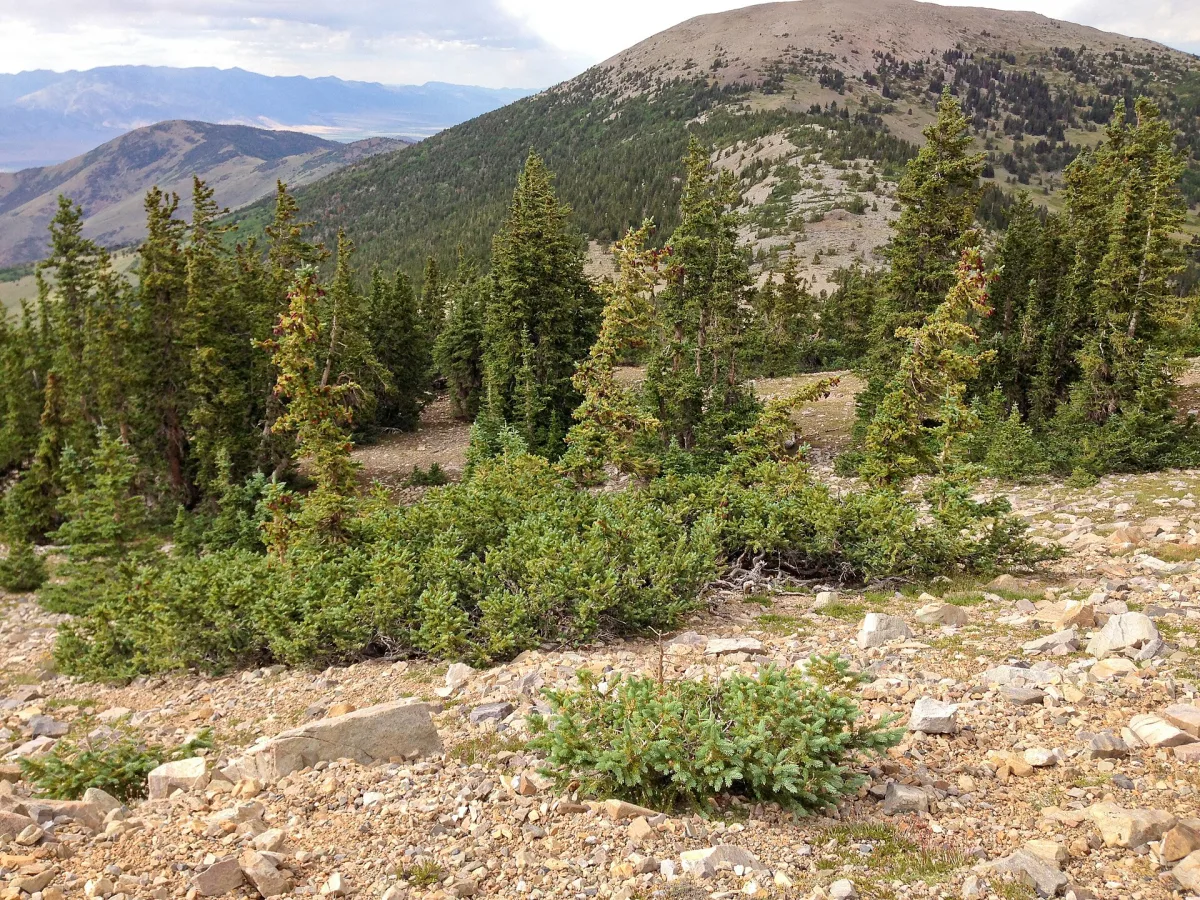
Верхняя граница леса на пике Уилер в Неваде: выше по склону ели мельчают, стелются по камням подушками, а дальше остаются только осыпи и травы. Фото: Famartin, CC BY-SA 3.0, Wikimedia Commons.
Сколько. В полдень на квадратный метр приходит около 1000 ватт солнца, а в прирост биомассы за сезон остаются единицы ватт: остальное теряется на каждом шаге цепочки от фотона до сахара. На такой разжиженной энергии нельзя бегать, зато можно стоять и собирать — потому растение неподвижно.
Как долго. Молодое дерево растёт быстро, старое почти нет: доход от листьев растёт с размером медленнее, чем расход на содержание всего тела, и рост выходит на плато. Про высоту — отдельный сюжет [[Почему деревья такие высокие]].
Что сделать. На любом склоне у тропы найдите, где кончаются деревья и начинается трава, — и отметьте, что граница идёт почти по горизонтали. Это изотерма, а не линия обрыва.
Свет: воронка потерь. Из 1000 Вт/м² полуденного солнца около 49 % приходится на ту часть спектра, которую хлорофилл вообще поглощает, а за вычетом отражённого и прошедшего насквозь лист ловит около 44 %1. Дальше цепочка потерь: энергия синего кванта тратится как красного, больше всего съедает сама сборка сахара, часть сжигают фотодыхание и дыхание, а ночь и облака выключают лист. Верхний предел КПД фотосинтеза — 4,6 % для обычных растений и 6 % для кукурузы и проса, а лес за сезон запасает 0,5–1 %. Иначе говоря, из каждого киловатта света, упавшего на лес, в древесину и листья уходит 5–10 ватт.
Воронка потерь света: из 1000 Вт/м² полуденного солнца лист поглощает около 44 %, верхний предел фотосинтеза 4,6 %, а лес за сезон запасает 0,5–1 %, то есть 5–10 ватт с каждого киловатта. Диаграмма.
Почему лист тонкий. Углекислый газ должен доползти до клеток диффузией, а время диффузии растёт как квадрат пути:
$$t\sim\frac{L^{2}}{D}$$
модель
То есть вдвое толще лист — вчетверо дольше доставка. Плоский лист — большая собирающая поверхность при коротком пути. За углекислый газ лист платит водой: устьица открыты — газ входит, пар выходит; на одну молекулу CO₂ уходят сотни молекул воды. Это главный компромисс наземного растения, и он же ограничивает, где растение может жить: где воздух сух, устьица закрыты, и роста нет.
Тепло: климат как карта. Нанесите на плоскость среднюю температуру и годовые осадки — природные зоны займут разные области: холодно и сухо — тундра, тепло и сухо — пустыня, тепло и влажно — тропический лес. Идею предложил Докучаев в 1899 году, а Будыко в 1971-м посчитал баланс энергии и влаги для каждой зоны. Граница леса — самая резкая линия на этой карте: Кёрнер и Паульсен в 2004 году измерили температуру корней у границы леса на всех континентах и получили 6,7 ± 0,8 °C за сезон — одно число для Альп, Гималаев и Анд.
Биомы Уиттекера: средняя годовая температура и осадки задают природную зону. Иннополис (норма Казани: +5,1 °C, 564 мм в год) лежит на стыке редколесий и листопадных лесов. Данные: Whittaker, 1975, в перерисовке Ricklefs, 2008; климат — «Погода и климат», станция Казань. График.
выше — холодно: дерево не успевает построить себя за лето
граница леса: ≈ 6–7 °C в среднем за сезон роста
внизу тепло — лес высокий
Склон с границей леса: внизу тепло и лес высокий, у границы деревья кривые и низкие, выше — температура сезона роста ниже 6–7 °C. Схема.
Предположения, стоящие за картиной:
Ресурсы — свет, вода, тепло — ограничивают рост независимо, и границу задаёт самый дефицитный.
Растение не может двигаться и должно жить там, куда попало семя.
Микроклимат у земли отличается от климата воздуха — на этом живут травы за границей леса.
Почему рост замедляется. Доход дерева — от листьев, их площадь растёт как поверхность; расход — на дыхание всех живых тканей, он растёт как масса. Поверхность растёт медленнее объёма, и с какого-то размера прибавка съедается содержанием. Ту же арифметику разбирает [[Скрытая математика размера]].
Тот же принцип в других местах. Солнечная панель даёт 20 % против 1 % у леса — но панель не должна сама себя строить, чинить и размножаться. Город кончается там, где доставка воды дороже жилья, как лес — где доставка воды дороже листа. Животное, в отличие от растения, носит топливо в себе и потому может двигаться к еде.
Zhu X.-G., Long S. P., Ort D. R. What is the maximum efficiency with which photosynthesis can convert solar energy into biomass? Current Opinion in Biotechnology 19:153–159, 2008; та же цепочка потерь — Zhu X.-G., Long S. P., Ort D. R. Improving photosynthetic efficiency for greater yield. Annual Review of Plant Biology 61:235–261, 2010, рис. 2: в полосе 400–700 нм 48,7 % солнечной энергии, вне её 51,3 %, после отражения и пропускания остаётся 43,8 % (проверено 28.09.2026); Докучаев В. В. К учению о зонах природы. СПб., 1899; Будыко М. И. Климат и жизнь. Л.: Гидрометеоиздат, 1971. ↩
Уравнение роста. Берталанфи в 1957 году, а независимо Шмальгаузен ещё в 1935-м записали рост как разность дохода, пропорционального поверхности, и расхода, пропорционального массе:
$$\frac{dM}{dt}=aM^{2/3}-bM$$
модель
Иначе говоря, пока тело мало, первый член больше — масса растёт быстро; с ростом второй догоняет, и при $M^{1/3}=a/b$ рост останавливается. Отсюда предельная масса $M_{\max}=(a/b)^{3}$: удвоить эффективность листа — и предел вырастет в восемь раз. Для реального дерева формула груба: старое дерево ещё долго толстеет, но его относительный прирост падает, и годичные кольца к старости сужаются — что и видно на любом спиле1.
Где именно проходит граница леса. Число 6,7 °C — температура корней, не воздуха, и это меняет объяснение: дереву не хватает не тепла для листьев, а тепла для роста тканей — деление клеток в стволе и корне ниже 5–6 °C почти останавливается. Трава выше границы живёт потому, что в десяти сантиметрах над прогретой землёй днём на несколько градусов теплее, чем на высоте кроны: маленькое растение сидит в другом климате. Модель Паульсена и Кёрнера 2014 года по одной этой температуре предсказывает положение границы леса на всех горах мира с ошибкой в десятки метров2.
Сколько остаётся энергии — в числах. Верхний предел КПД 4,6 % посчитали Чжу, Лонг и Орт, вычитая одно звено цепочки за другим: 51 % света лежит вне полосы поглощения, 4,9 % отражается и проходит сквозь лист, 6,6 % теряется, пока энергия синего кванта сбрасывается до красного, около 25 % уходит на сборку сахара, 6 % съедает фотодыхание и 2 % — дыхание. От 100 % остаётся 4,6 %. У кукурузы и проса фотодыхания нет, зато сборка сахара дороже, и выходит 6 %. Реальные посевы дают 1–2 %, лес — меньше процента. Так что «лист неэффективен» — неверная формулировка: он близок к своему пределу, а предел низок из-за физики3.
Скорость не нарушает предела. Бамбук растёт почти на метр в сутки — миллиметр в минуту, — но не из воздуха: побег тянется на запасах корневища, накопленных за годы, и на воде, которая раздувает готовые клетки. Остистая сосна живёт почти пять тысяч лет, клональная роща осины — десятки тысяч, но каждый ствол в ней стар не больше обычного дерева. Долгожительство и скорость покупаются не отменой неравенств, а их растяжкой во времени.
Кто открыл. Что растение строит себя не из почвы, показал в 1640-х Ян ван Гельмонт: он посадил иву в взвешенную кадку земли и пять лет поливал её почти одной водой — дерево прибавило десятки килограммов, а почва потеряла граммы. Вывод он сделал неверный (решил, что масса из воды), но вопрос поставил правильный, и ответ — углекислый газ воздуха — пришёл через полтора века. Стивен Гейлс в 1727 году присоединял к срезанным стеблям трубки, мерил давление и испарение и первым описал растение как систему потоков; его «Статика растений» — начало физиологии растений как физики. А что рост подчиняется балансу «приход через поверхность — расход через объём», записали уравнением независимо Людвиг фон Берталанфи и Иван Шмальгаузен в 1930-х. Самое высокое дерево из измеренных — секвойя Гиперион в Калифорнии, 116 м — стоит ровно там, где предел воды и предел колонны сходятся4.
Границы этого рассуждения.
Уравнение Берталанфи — для одиночного растения. В лесу рост задаёт ещё и сосед: затенение снижает $a$, и предел падает раньше.
Климат не объясняет всё. Семя может не долететь, на участке может не быть нужного гриба-симбионта, корни упираются в скалу; карта Докучаева — карта возможного, а не обязательного.
6,7 °C — среднее с разбросом ±0,8. На сухих хребтах граница ниже изотермы — там дерево ограничивает вода, а не тепло.
Потери фотосинтеза посчитаны для 30 °C и нынешнего CO₂. В прохладе и при росте углекислого газа предел сдвигается.
О чём спорят. Что останавливает дерево у границы леса — недостаток тепла для роста тканей (гипотеза Кёрнера) или недостаток углерода, потому что фотосинтез на холоде слаб? Измерения показывают, что запасы сахаров у деревьев на границе леса не истощены, а часто выше, чем ниже по склону, — значит, дереву есть из чего строить, но строить оно не может. Гипотеза ограничения роста побеждает, но противники указывают на леса на тёплых, но сухих или ветреных склонах, где линия проходит иначе2.
Открытый вопрос. Граница леса поднимается вслед за потеплением, но медленнее, чем изотерма: в Альпах и на Урале деревья отстают от «своей» температуры на десятилетия. Что держит их — медленное расселение семян, отсутствие почвы выше, выпас, — или сама модель одной температуры слишком проста, пока не решено.
von Bertalanffy L. Quantitative laws in metabolism and growth. Quarterly Review of Biology 32:217–231, 1957; Шмальгаузен И. И. Определение основных понятий и методика исследования роста. М.–Л.: АН СССР, 1935. ↩
Körner C., Paulsen J. A world-wide study of high altitude treeline temperatures. Journal of Biogeography 31:713–732, 2004 (onlinelibrary.wiley.com); Paulsen J., Körner C. A climate-based model to predict potential treeline position around the globe. Alpine Botany 124:1–12, 2014. ↩↩
Zhu X.-G., Long S. P., Ort D. R. What is the maximum efficiency with which photosynthesis can convert solar energy into biomass? Current Opinion in Biotechnology 19:153–159, 2008; та же цепочка потерь — Zhu X.-G., Long S. P., Ort D. R. Improving photosynthetic efficiency for greater yield. Annual Review of Plant Biology 61:235–261, 2010, рис. 2: в полосе 400–700 нм 48,7 % солнечной энергии, вне её 51,3 %, после отражения и пропускания остаётся 43,8 % (проверено 28.09.2026); Докучаев В. В. К учению о зонах природы. СПб., 1899; Будыко М. И. Климат и жизнь. Л.: Гидрометеоиздат, 1971. ↩
Hales S. Vegetable Staticks. London, 1727; Шмальгаузен И. И. Рост организмов. М.–Л., 1935. ↩

 Научно-популярный туризм


