Деревья закручиваются не из-за вращения Земли — здесь часто вспоминают силу Кориолиса. Это кажущаяся сила, которая возникает, когда мы описываем движение относительно вращающейся Земли. Из-за вращения планеты движущийся воздух, вода или другое тело немного отклоняется в сторону: в Северном полушарии — вправо от направления движения, в Южном — влево. Поэтому сила Кориолиса важна для движения воздушных масс и океанических течений и, например, участвует в формировании вращения циклонов.
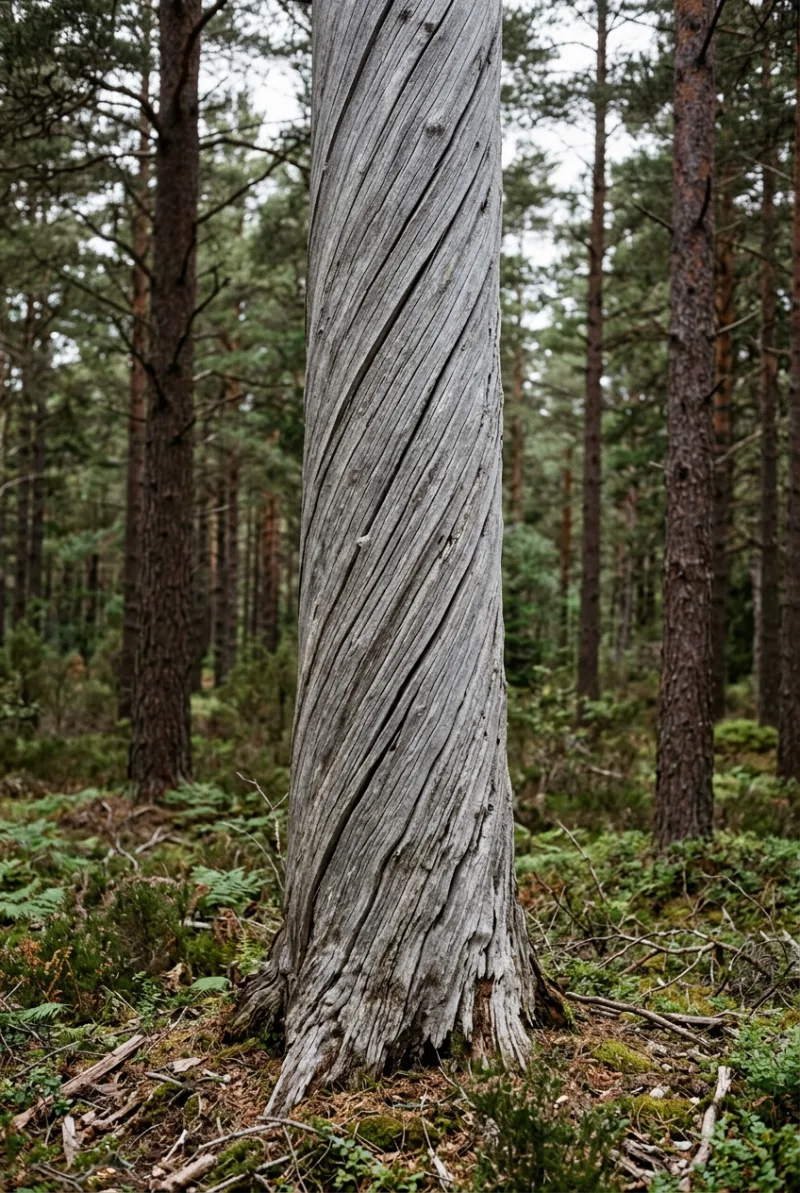
Но для закручивания ствола её недостаточно. Действие силы Кориолиса на растущее дерево ничтожно по сравнению с механическими напряжениями от ветра, собственного веса и роста ствола. Дело в самом строении ствола. Волокна древесины идут не строго вертикально, а по пологой спирали, и ствол оказывается слегка свит, как канат.
Зачем это дереву? Главная причина — надёжность внутреннего водопровода. Если бы каждый корень поил ровно свою сторону кроны, тогда гибель одного корня высушила бы целую ветку с одного бока. А по спирали каждый корень раздаёт воду понемногу во все стороны кроны — как коса из прядей, где нагрузку держат все сразу. Один корень отказал — крона получит воду от остальных.
Есть и второй выигрыш, механический. Скрученный ствол на ветру упруго проворачивается и пружинит, вместо того чтобы треснуть.
волокна идут по спирали — ствол свит, как канат
каждый корень раздаёт воду во все стороны кроны
Винтовые волокна ствола сосны: волокна идут по пологой спирали, ствол слегка свит, как канат, и каждый корень раздаёт воду понемногу во все стороны кроны. Схема.
У этого явления есть имя — спиральная волокнистость древесины. Запомните образ: дерево устроено как витой канат, а не как пучок прямых палок. Витая спираль всегда живучее и прочнее.
Числовая оценка (механика кручения). Если ветер пытается повернуть крону относительно основания ствола, возникает крутящий момент — по-школьному, «сила, умноженная на плечо». Чем дальше от оси приложена сила и чем она больше, тем сильнее она стремится повернуть ствол. Для такого кручения в упругом режиме угол закрутки можно оценить формулой:
$$\varphi = \frac{T \cdot L}{G \cdot J}$$
Здесь $\varphi$ — угол закрутки в радианах, $T$ — крутящий момент от ветра, $L$ — длина ствола, $G$ — модуль сдвига древесины, а $J$ — полярный момент площади сечения. Последний термин звучит так, будто речь идёт об инерции массы, но здесь масса вообще ни при чём. $J$ показывает, насколько площадь сечения удалена от оси кручения: материал, расположенный дальше от оси, гораздо эффективнее сопротивляется закручиванию. Это прямой родственник школьного момента инерции сечения $I$, который встречается в задачах на изгиб балки; только при кручении расстояние до оси берётся во все стороны, поэтому используется полярный момент $J$. Для круглого ствола его можно вывести как сумму вкладов маленьких площадок сечения: каждая площадка вносит тем больше, чем дальше она от оси. В результате
$$J = \frac{\pi \cdot d^4}{32}$$
И вот здесь появляется особенно сильная зависимость: $J \propto d^4$. Диаметр входит в формулу в четвёртой степени, потому что одновременно растёт и площадь древесины, и расстояние этой древесины от оси. Утолщить ствол вдвое — значит увеличить его сопротивление кручению в $2^4 = 16$ раз. Это хорошо согласуется со школьной интуицией о рычаге: материал, вынесенный подальше от оси, работает гораздо эффективнее. Поэтому тонкий молодой ствол при той же нагрузке закручивается заметно сильнее, а толстый — гораздо меньше. Но формула описывает именно упругую закрутку: она не означает, что тонкое деревце обязательно «закрутится навсегда»; постоянная деформация возникает уже при повреждении или выходе за пределы упругой работы древесины.
Ветер давит на несимметричную крону сбоку от оси, и возникает крутящий момент T = F · r. При том же моменте ствол вдвое толще закручивается в 16 раз меньше, потому что J растёт как d⁴. Схема.
Есть и простая проверка размерности. Крутящий момент $T$ измеряется в Н·м, длина $L$ — в м, поэтому числитель $TL$ имеет размер Н·м². Модуль сдвига $G$ измеряется в Н/м², а $J$ — в м⁴; их произведение тоже даёт Н·м². Размерность сокращается, и $\varphi$ остаётся безразмерной величиной — именно такой и должна быть угловая мера в радианах. Если вместо $J$ поставить обычную площадь сечения в м², размерности уже не сойдутся: это хороший способ понять, что в механике кручения важна не только площадь древесины, но и то, где эта площадь находится относительно оси.
Откуда берётся сильная закрутка. Обычная спиральность держится в пределах нескольких градусов, её выдают только трещины коры да поведение доски при сушке. Но изредка попадается сосна, свитая так, что закрутку видно с тропы. Есть два предположения о внешнем виде такого дерева: первая — травма: вершинку объели, побег сломало, дальше дерево росло вкривь, вторая — генетическое изменение, возникшее в клеточной линии верхушечной меристемы, из которой затем сформировалась часть ствола.
Сухостойная сосна без коры: трещины усыхания идут по стволу винтом, вдоль волокон древесины, и спиральная волокнистость становится видна глазом. Иллюстрация.
Различить эти причины можно по потомству, но здесь важно не упростить генетику. Повреждение верхушки само по себе не меняет наследственную информацию и в семена не передаётся, поэтому сеянцы от такой сосны не обязаны повторять её форму. А вот мутация может передаться потомству только в том случае, если изменённая клеточная линия участвует в образовании репродуктивных органов и половых клеток. У растений граница между «соматической» и «наследуемой» мутацией менее жёсткая, чем у животных: клетки меристемы могут давать начало и вегетативным, и репродуктивным тканям. Поэтому сама фраза «мутация сидит в клетках» ничего не доказывает.
Если мутагенный фактор, например химическое вещество, действует на семя или развивающийся зародыш, он может вызвать мутации в клетках, из которых впоследствии сформируются разные части растения, в том числе репродуктивные органы. Но и тогда наследование не следует автоматически: всё зависит от того, в какой клеточной линии возникло изменение и какой у него генетический эффект. «Половина всходов» появляется не просто потому, что мутация добралась до шишек, а при конкретном случае — например, если мутация доминантная, присутствует в гетерозиготном состоянии в клеточной линии, дающей половые клетки, и эти клетки участвуют в опылении. Тогда при соответствующем скрещивании ожидается расщепление примерно 1:1.
Именно поэтому для проверки гипотезы о мутации нужен посев семян, а не рассуждение по внешнему виду дерева.
Как выглядит внешняя причина, видно на Куршской косе. Сосны на дюне Круглой посадили в 1961 году, чтобы закрепить пески, и лет через двадцать заметили, что стволы на дюне уходят петлями и кольцами, тогда как в соседних посадках деревья выросли ровными. Главная версия — гусеница побеговьюна зимующего: она выедает верхнюю часть побега с почками, боковые почти не трогает, и предпочитает деревца от пяти до двадцати лет. Верхушка потеряна, рост подхватывает боковая почка, ствол сворачивает вбок. Версия спотыкается на географии: повреждён небольшой, почти квадратный участок большого соснового леса, а остальной лес цел, и почему гусеница выбрала квадрат, никто не объяснил.
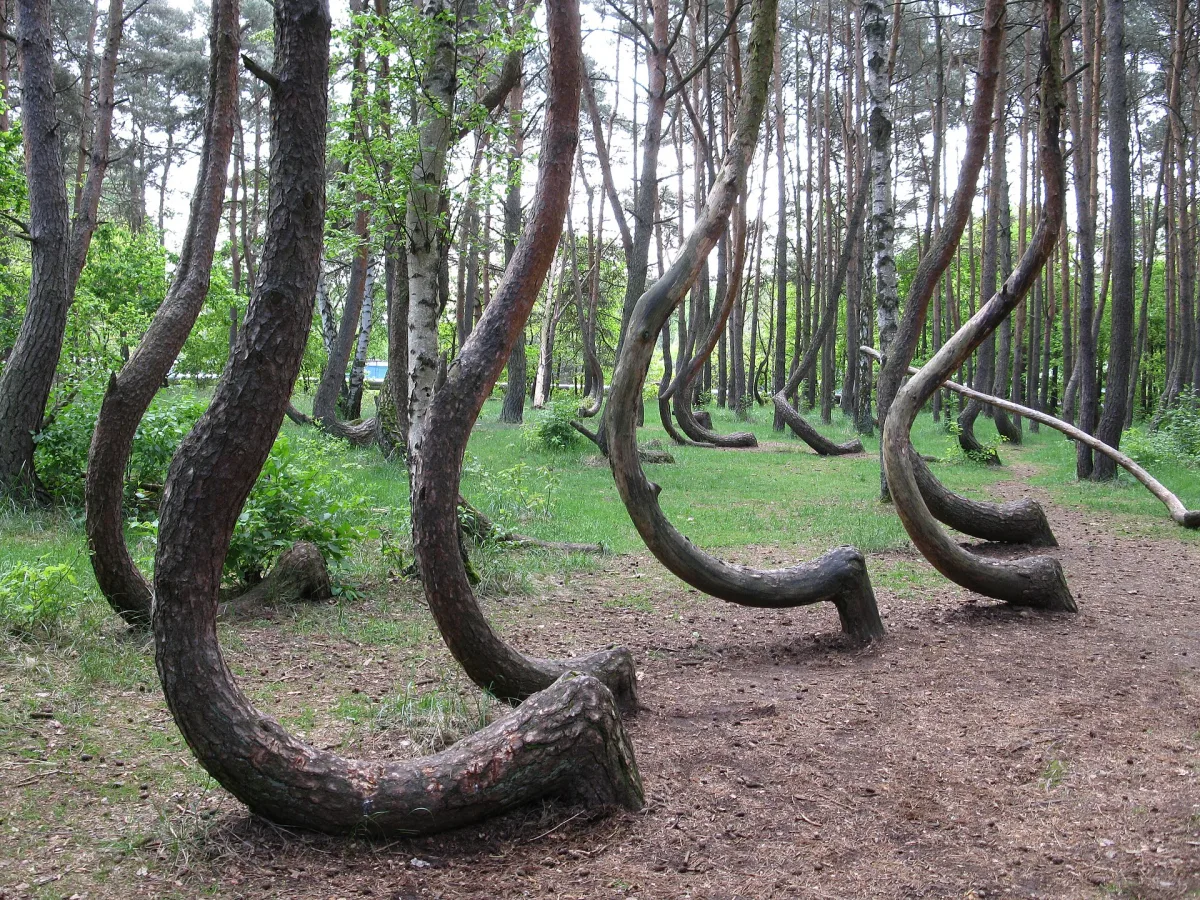
Под Грыфино в Западной Померании стоит роща поразительнее. Около четырёхсот сосен посадки примерно 1930 года согнуты у самого основания почти под прямым углом, все в одну сторону, на север, и все на одной высоте; отойдя на метр-три в бок, ствол выпрямляется и дальше идёт вверх обычным деревом. Дендрологическое обследование 1971 года насчитало четыреста деформированных деревьев в 22 рядах с шагом 120 сантиметров на половине гектара. Вокруг растут прямые сосны того же леса. Самая ходовая версия — молодые деревца гнули нарочно, кольями или проволокой, ради гнутой древесины на мебель, полозья и лодочные детали; война оборвала работу и унесла свидетелей.
Кривой лес у Грыфино (Нове-Чарново): сосны согнуты у самой земли в одну сторону, а выше стволы идут вверх ровно. Фото: Rzuwig, CC BY-SA 3.0, Wikimedia Commons.
Обе рощи посажены, и в этом всё дело. Саженцы приехали из питомника от разных матерей, и одинаковой мутации у четырёхсот неродственных деревьев маловероятно ожидать. Когда кривым выходит целый участок посадки, а соседний участок ровен, причина, скорее всего, связана с местом и временем воздействия. Наследуемая мутация отдельного дерева может объяснить его потомство, но сама по себе не объясняет синхронную деформацию сотен неродственных деревьев на одном участке.
Есть и второй признак, который читается прямо на стволе. И на косе, и под Грыфино дерево согнуто в одной точке: излом начинается там, где потерялась верхушка, а выше и ниже волокна идут обычным порядком. Спиральность же тянется ровно по всему стволу, снизу доверху. Поэтому одиночная сосна, свитая как канат от корня до кроны, к танцующим не относится, и вопрос о её клетках остаётся открытым.
На закрученных соснах такой посев почти никто не делал. Зато его целиком проделали на другой странности кроны, на ведьминой метле. Метла — плотный пучок укороченных побегов посреди обычных ветвей, и о её причине спорят так же: то ли ветку испортила зараза, то ли в клетках случилась мутация. Дерево с метлой удобно тем, что несёт собственный контроль: шишки собирают отдельно с метлы и отдельно с нормальной ветки того же дерева.
Посев ответил. С мутационной метлы примерно половина сеянцев вырастает карликами, а с нормальной ветки того же дерева карликов нет ни одного. Если метлу вызвала зараза, потомство рождается целиком нормальным: возбудитель живёт в тканях ветки и в семена не переходит. Посев действительно различает эти две причины, и к закрученной сосне его можно применять с тем же расчётом. Разница в контроле: у метлы он растёт на том же дереве, а у сосны свит весь ствол, и сравнивать приходится с соседними нормальными соснами того же возраста.
Мешает одно: закрученные сосны дают мало семян. На мётлах видно то же самое — шишки в полтора-три раза мельче нормальных, полнозернистых семян у части клонов меньше половины. Скудное потомство само по себе кивает в сторону мутации: она редко меняет одну-единственную черту. Ответа придётся ждать долго: в лесных опытах угол волокон меряют у деревьев в 28 лет.
Когда мутация, а когда нет. Закрутка ствола сама по себе о причине не говорит. Различают её два действия: посев семян и прививка черенка на нормальный подвой в нормальном месте.
Причина закрутки
Что с геномом
Семенное потомство
Привой на нормальном подвое
Норма породы: обычная спиральность 2–5°
Наследуется количественно, многими генами
Сеянцы в среднем ближе к родителю по углу, резкого расщепления нет
Держит свой угол
Травма: объедена вершинка, слом, ожог
Цел
Все сеянцы нормальные
Растёт нормально
Место: ветер, склон, однобокий свет
Цел
Все сеянцы нормальные
Растёт нормально
Заразное начало (фитоплазма, гриб)
Цел
Все сеянцы нормальные
Признак может повториться: возбудитель переезжает с черенком
Доминантная мозаичная мутация в клеточной линии, давшей начало шишкам
Изменён в данной клеточной линии
При соответствующем опылении около половины сеянцев закручены; ожидается расщепление ~1:1
Закручен
Та же мутация в линии, шишек не давшей: камбий, другой сектор кроны
Изменён на своём участке
Все сеянцы нормальные
Закручен, если черенок взят с закрученного сектора
Врождённая рецессивная гомозиготность (пришла с семенем от обоих родителей)
Изменён
При свободном опылении сеянцы нормальные; признак вернётся у четверти при самоопылении или скрещивании сибсов
Закручен
Как читать таблицу. Мутацию доказывает одна строка из семи: расщепление в потомстве примерно поровну. Нормальные сеянцы её не отменяют, потому что нижние строки дают тот же результат. Прививка отсекает место и старую рану, но не отсекает заразу, поэтому воспроизведённый в привое признак требует ещё и проверки на возбудителя.
Вывод. Спиральность — не дефект и не каприз ветра, а конструктивное решение: один приём даёт и надёжный водоток, и упругость на скручивание. Тот же принцип витой структуры работает в стальном канате, в спиральной укладке мышечных волокон сердца и в закрученных стеблях лиан. Сильная закрутка отдельного дерева под этот вывод не подводится: её происхождение решают посевом и прививкой, а не механикой.
Примечание о мутациях. В растении мутация, возникшая в одной клеточной линии, может остаться мозаичной и не попасть в потомство. Если же эта линия даёт начало репродуктивным органам, изменение может оказаться в половых клетках и наследоваться. Поэтому для «половины всходов» нужны не просто шишки с мутантного дерева, а конкретный генетический сценарий и соответствующий результат посева.
 ✓ проверено экспертом

 Научно-популярный туризм