Посмотрите на сосну или берёзу рядом с тропой. Длинный голый ствол, и вся живая работа — листья, хвоя, шишки — начинается высоко над головой. Оглянитесь: в лесу почти все деревья устроены так же. Дерево тратит десятилетия и тонны древесины на часть, которая сама ничего не производит.
Причина в том, что лес — вертикальная борьба за свет. Под чужой кроной листу нечего делать: солнце достаётся тому, кто выше. Дерево, поднявшееся на метр над соседом, отнимает у него свет, и ствол — цена этого преимущества.
Но если высота так выгодна, почему деревья не растут до облаков? Их останавливают два независимых закона. Первый — вода: столб воды в стволе висит на собственном сцеплении молекул, и чем он выше, тем сильнее натянут. Второй — механика: тонкая колонна под собственным весом прогибается и ломается. Самое высокое дерево на Земле, секвойя в Калифорнии, остановилось на 112,7 метра — по расчёту ботаников, дальше 122–130 метров ей не подняться, сколько бы воды ни было в почве.
Что сделать. Найдите два дерева одной породы: одно на опушке, другое в глубине леса. У лесного ствол длиннее и голее — оно тянулось за светом, у опушечного крона ниже: света хватало и так.
Свет как ресурс, за который дерутся. Лист, попавший в тень соседней кроны, получает не половину света, а несколько процентов: каждый слой листвы над ним отбирает свою долю. Поэтому выигрывает не тот, кто раскинул листья шире, а тот, кто поднял их выше других. Ствол — инженерное решение этой задачи: поднять фотосинтез туда, где есть солнце.
Первый предел — вода против тяжести. Дерево пьёт корнями и испаряет листьями, а между ними в стволе тянется непрерывный столб воды. Насосом снизу его не поднять: атмосферное давление держит всего десять метров водяного столба. Дерево делает иначе — тянет воду сверху. Испарение в листе вытягивает молекулу за молекулой, а столб не рвётся, потому что молекулы воды держатся друг за друга. Чем выше дерево, тем сильнее натянута эта нить, и на какой-то высоте лист уже не может получить воду быстрее, чем теряет: он мельчает, фотосинтез падает, рост останавливается. Как именно устроена эта тяга — в сюжете [[Как дерево поднимает воду]].
Второй предел — колонна против собственного веса. Поставьте вертикально длинную тонкую линейку: до какой-то длины она стоит, а потом прогибается вбок и ломается, хотя никто на неё не давил. Это упругая потеря устойчивости, её описал Леонард Эйлер в 1757 году для колонн и мачт. Ствол — та же колонна. Чтобы стоять, он должен толстеть быстрее, чем расти: у деревьев толщина растёт не пропорционально высоте, а быстрее.
150 м
предел воды: выше ~100–130 м нить воды рвётся
100 м
предел колонны: тонкий ствол складывается
толще ствол — выше предел: вдвое выше — почти втрое толще
Два предела высоты: выше ста с лишним метров рвётся нить воды, а тонкий ствол складывается под собственным весом раньше толстого. Схема.
Предположения, на которых стоит рассуждение.
Свет — главный ограниченный ресурс леса; в засушливой степи или на болоте это уже не так.
Вода в стволе — сплошная нить без пузырей.
Ствол — однородная упругая колонна, нагруженная только своим весом.
Каждое из трёх где-то нарушается, и об этом ниже.
Где работает тот же компромисс. Высоту небоскрёба ограничивает не столько прочность стали, сколько подача воды и лифты на верхние этажи — инженерный аналог гидравлического предела. Мачту и заводскую трубу ограничивает устойчивость: их делают либо толще у основания, либо с оттяжками, потому что прямая колонна выше определённой длины не стоит. Жираф упирается в оба предела сразу: и давление крови до головы, и прочность ног.
Сколько выдерживает колонна. Критическая высота однородного стержня, стоящего вертикально под собственным весом, растёт не с толщиной напрямую, а с её степенью две трети:
Иначе говоря, чтобы стать вдвое выше, колонна должна стать почти втрое толще: $2^{3/2}\approx 2{,}8$. Здесь $E$ — модуль упругости древесины, $\rho$ — её плотность, $d$ — диаметр, $C$ — число порядка единицы. Томас Макмахон в 1973 году сравнил этот закон с измерениями сотен деревьев разных пород и нашёл, что высота и вправду растёт как диаметр в степени две трети — а реальные деревья держатся заметно ниже критической высоты, с запасом на ветер и снег1.
Отсюда следствие, которое видно на любой лесной дороге: молодое дерево тонкое и гибкое, старое — толстое и коренастое. Это не старение, а геометрия: тот же закон, что не даёт увеличить мышь до слона простым масштабированием.
Где именно останавливается вода. Группа Джорджа Коха в 2004 году поднялась на самые высокие секвойи Калифорнии и измерила, как с высотой меняются листья. К вершине они мельчают, плотнеют и всё хуже работают: на 110 метрах натяжение воды в проводящих сосудах подходит к −1,9 МПа, дальше нить рвётся, и в сосуде появляется пузырь. Экстраполяция даёт предел 122–130 метров — при любом количестве воды в почве2.
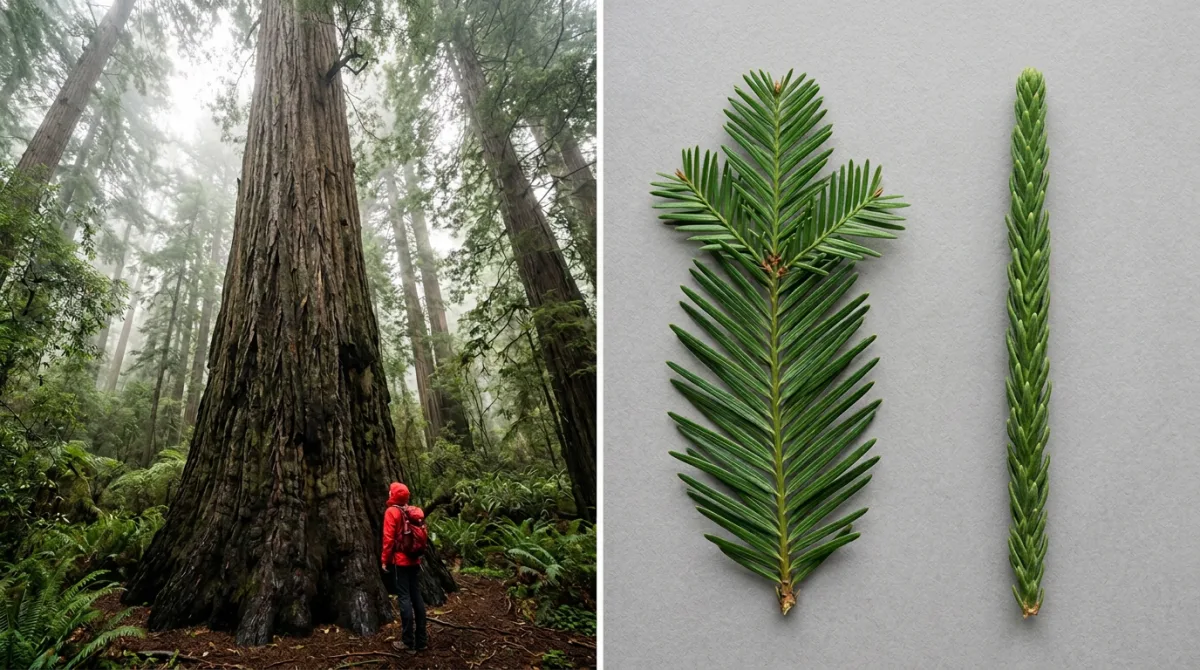
Слева — секвойя, у подножия человек для масштаба. Справа — два побега секвойи: с нижних ветвей хвоя длинная и плоская, с вершины — короткая, толстая, прижатая к веточке. Иллюстрация.
Два предела на одной шкале. Для секвойи гидравлический предел лежит около 125 м, механический для её толщины — выше. Для берёзы с диаметром 40 см механический предел по формуле Эйлера — порядка 40–50 м, и она в такой рост не вырастает: раньше срабатывает вода и медленный рост. Какой предел ниже, тот и решает; у большинства деревьев это вода.
Механический предел высоты растёт как диаметр в степени 2/3: у берёзы толщиной 40 см это 40–50 м, а чтобы стать вдвое выше, ствол должен стать толще в 2,8 раза. Голубая полоса — предел по воде у секвойи, около 125 м. Оси логарифмические. График.
Кто открыл. Что дерево не насос, а натянутая нить, поняли в конце XIX века, когда Йозеф Бём и Эдуард Страсбургер показали, что срезанное дерево с отравленным стволом продолжает поднимать воду, а Джон Джоли и Генри Диксон в 1894 году сформулировали теорию сцепления-натяжения: столб воды держится связями между молекулами и тянется испарением сверху. Первым же растение как систему потоков описал Стивен Гейлс в 1727 году, измеряя давление сока трубками на срезанных стеблях. Проверка предела на живом дереве заняла ещё век: в 2004 году группа Джорджа Коха поднялась на самые высокие секвойи Калифорнии и измерила, что у вершины Гипериона — 116 м — вода в листьях уже на грани разрыва и листья там мелкие и жёсткие, как при засухе; расчётный предел для секвойи вышел 122–130 м2.
Границы этого рассуждения.
Колонна не однородна. Настоящий ствол сужается кверху и держит крону, которая парусит на ветру. Ветровая нагрузка ломает деревья чаще, чем собственный вес: статический предел Эйлера — верхняя оценка, а не рабочий режим.
Ксилема не одна трубка. Сосуды тянутся не от корня до листа, а короткими отрезками с перегородками, и пузырь в одном не рвёт весь столб. Поэтому предел по воде размыт, а не резок.
Свет — не всегда главное. В тундре и на верхней границе леса деревья останавливаются на метрах, потому что зимний ветер и холод обрезают всё, что выше снега. Там высоту задаёт не конкуренция, а мороз.
Оценки Коха — для секвойи. Порог −1,9 МПа и предел 122–130 м относятся к одному виду в одном климате; у эвкалиптов и дугласий свои числа.
О чём спорят. Какой из двух пределов реально останавливает самые высокие деревья, обсуждается до сих пор. Работу Коха оспаривали: критики указывали, что измельчание листьев к вершине может быть не следствием водного стресса, а нормой для освещённой верхушки кроны, и что гидравлический предел ещё не достигнут. Ответ авторов и спор в двух статьях 2008 года остались без общего решения3. Есть и третья версия: высоту ограничивает не физика вовсе, а время — сколько лет дерево успевает расти до пожара, урагана или болезни.
Открытый вопрос. Почему в одном климате рекордсмены — хвойные, а не лиственные? Секвойя, дугласия и эвкалипт делят первые строчки, а самый высокий дуб или бук не дотягивает и до 50 м. Древесина хвойных легче и при равной массе даёт большую критическую высоту, но полное объяснение, включающее и гидравлику, и скорость роста, пока не собрано.
McMahon T. Size and Shape in Biology. Science 179:1201–1204, 1973 (science.org). ↩
Koch G. W., Sillett S. C., Jennings G. M., Davis S. D. The limits to tree height. Nature 428:851–854, 2004 (nature.com). ↩↩
Netting A. G. Limitations within «The Limits to Tree Height». American Journal of Botany 96(2):542–544, 2009; ответ Koch et al. там же, doi 10.3732/ajb.0800399 (bsapubs.onlinelibrary.wiley.com). ↩

 Научно-популярный туризм