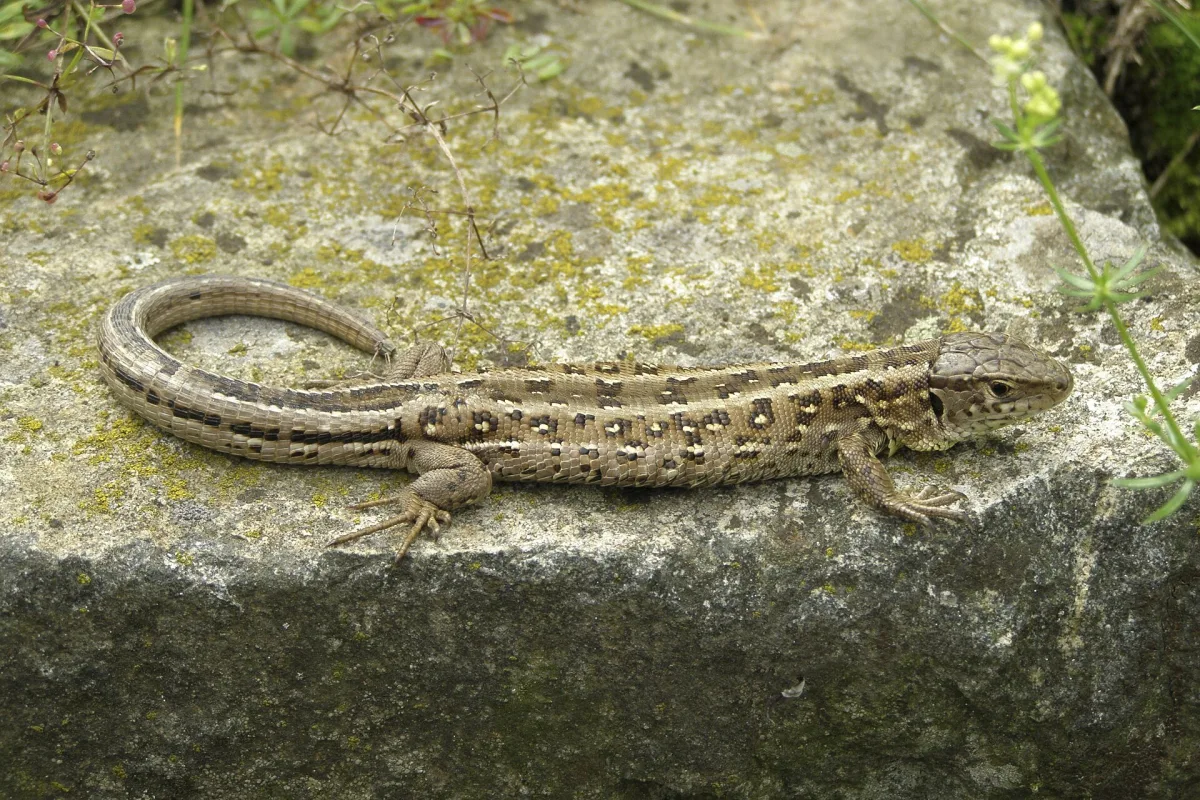
На прогретом камне у тропы прыткая ящерица видна, только пока бежит. Остановилась — и глаз теряет её, хотя она никуда не делась. Слово «кажется» здесь главное: маскировка существует не сама по себе, а в системе «объект — фон — наблюдатель». Исчезнуть значит стать трудной мишенью для конкретного глаза — совпасть с фоном по яркости, по цвету так, как его видит хищник, по масштабу узора и не выдать себя краем.
Прыткая ящерица на замшелом камне: бурые и серые пятна со светлыми полосками повторяют пестроту камня и лишайника. Пока она неподвижна, глаз с трудом собирает её силуэт. Фото: Krzysztof Mizera, CC BY-SA 3.0, Wikimedia Commons.
Человеческий глаз замечает разницу в яркости в один-два процента, а птичий вдобавок видит ультрафиолет, которого мы не видим вовсе. Поэтому ящерица, которая исчезла для нас, может быть отлично видна пустельге, и наоборот. И никакая окраска не спасает от главного — движения: детекторы движения в зрительной системе чувствительнее всего остального.
Что сделать. Заметив ящерицу, замрите сами и смотрите, как она замирает. Потом отведите взгляд на пять секунд и попробуйте найти её снова, не двигая головой.
Слиться — для чьих глаз. Контраст — это разница яркостей объекта и фона, делённая на яркость фона. Глаз в хороших условиях различает контраст порядка процента, но порог растёт в сумерках и для мелких пятен. Ещё важнее цвет: рецептор не измеряет длину волны, а суммирует весь спектр со своей кривой чувствительности. У человека три типа колбочек, у большинства дневных птиц четыре, и четвёртый смотрит в ультрафиолет. Одна и та же кожа может совпасть с камнем для трёх рецепторов и промахнуться для четвёртого.
Три этажа кожи. Окраска рептилий собрана как маленький оптический прибор. Сверху — клетки с жёлтыми и красными пигментами, фильтр. Под ними — иридофоры со стопками нанокристаллов гуанина, отражатель, который даёт цвет не пигментом, а интерференцией, как мыльная плёнка. Внизу — меланофоры с чёрным пигментом, поглотитель. Итоговый цвет — свет, прошедший фильтр, отражённый решёткой и не съеденный чёрным слоем.
три этажа кожи: пигмент, зеркальца, тёмное дно
цвет подбирается под глаз хищника, не под наш
тёмная
гранулы разошлись — темнее; собрались в точку — светлее
светлая
Ящерица на камне светлая и потемневшая, и три этажа её кожи: пигментные клетки, зеркальца, тёмное дно; гранулы разошлись — темнее. Схема.
Как цвет меняется за секунды. Два способа, и их не стоит путать. Первый — перераспределить пигмент: гранулы меланина в меланофоре собираются в центр клетки или расползаются по отросткам, и кожа светлеет или темнеет. Второй — изменить расстояние между нанокристаллами в иридофоре: у пантерового хамелеона в спокойном состоянии решётка плотная и отражает синий, в возбуждённом растягивается и отражает жёлтый и красный. Отсюда поправка к школьному мифу: хамелеон — не живые обои, его яркие быстрые перестройки служат сигналам самцам и самкам, а не маскировке.
Предположения, стоящие за объяснением:
У хищника есть глаз с известным набором рецепторов — маскировка считается под него.
Освещение задано: под кроной и на открытом солнце спектр разный.
Наблюдатель ищет края и движение, а не только цветные пятна.
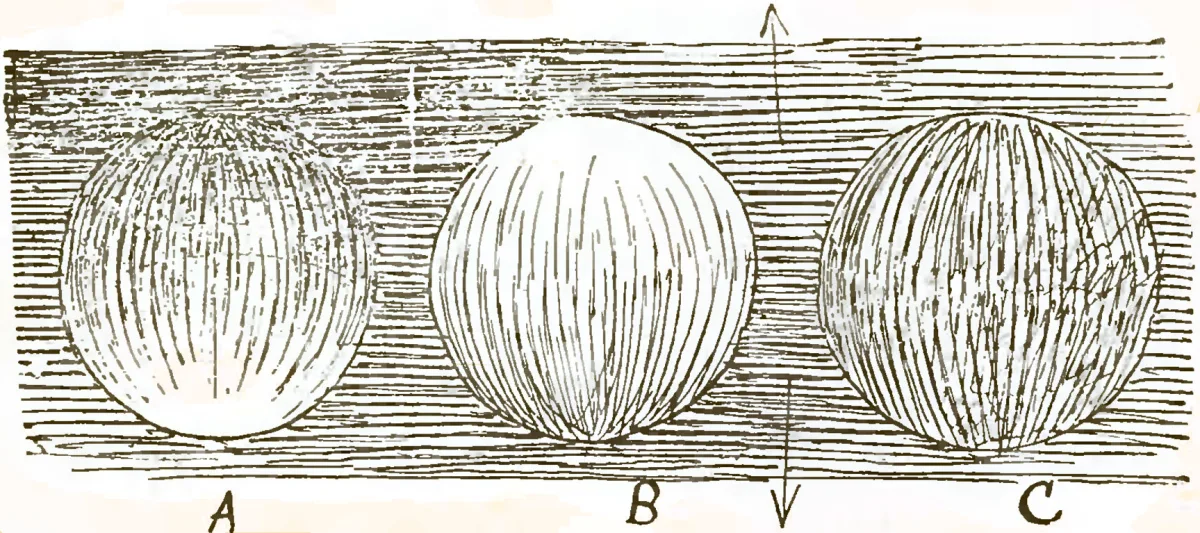
Совпасть по цвету недостаточно. Зрение ищет края. Ровно окрашенное тело выдаёт замкнутый контур; расчленяющая окраска — контрастные пятна, выходящие за край тела, — ломает контур на куски, и глаз не собирает силуэт. Вторая подсказка хищнику — тень: выпуклое тело сверху светлее, снизу темнее. Противотень, когда спина темнее брюха, гасит этот градиент, и тело кажется плоским. Это заметил художник Эббот Тэйер в 1896 году, а систематизировал Хью Котт в 1940-м.
Противотень на схеме Тэйера: A — окраска животного, сверху темнее, снизу светлее; B — так небо освещает шар: сверху светло, снизу тень; C — два эффекта гасят друг друга, и шар сливается с фоном. Рисунок: Abbott H. Thayer, 1896, общественное достояние, Wikimedia Commons.
Тот же принцип в других местах. Дневная Луна видна ровно настолько, насколько её яркость отличается от неба — в [[Луна днём]] та же формула контраста. Военный камуфляж после Тэйера строят по его правилам: расчленение и противотень, а не «покраска под лес». Пятнистая окраска на сетчатке хищника исчезает с расстояния, когда период пятен меньше разрешения глаза — для трёхмиллиметровых пятен это около пяти метров.
Зеркало из нанокристаллов. Простейшая модель иридофора — стопка чередующихся слоёв с показателями преломления $n_1$ и $n_2$; отражения от соседних границ складываются, если удвоенная оптическая толщина пары равна длине волны:
$$2(n_1 d_1 + n_2 d_2) = \lambda$$
модель
Иначе говоря, для синего света 480 нм при гуанине ($n \approx 1{,}83$) и цитоплазме ($n \approx 1{,}33$) четвертьволновые слои должны быть толщиной 66 и 90 нм — это нанометры, масштаб, до которого клетка достраивает кристалл. При наклонном взгляде оптический путь укорачивается, и максимум сдвигается в синюю сторону: под 45° те же слои отражают уже 427 нм. Так работает переливающийся цвет у хамелеона: Тейсье с соавторами в 2015 году показали микроскопией, что решётка кристаллов растягивается на десятки процентов, и цвет уходит от синего к красному без единого пигмента1.
Цена окраски — тепло. Тёмная кожа поглощает больше солнца. Ящерица массой 10 г с площадью спины 15 см² на солнце в 800 Вт/м² при поглощении 0,9 получает около одного ватта; чтобы нагреться на 10 °C, ей нужно 350 джоулей — около пяти-шести минут. Светлая, с поглощением 0,6, греется на четверть дольше. Утром тёмная выигрывает, в полдень проигрывает — поэтому многие ящерицы темнеют на рассвете и светлеют к полудню: тот же меланин работает и на маскировку, и на терморегуляцию, и оба требования тянут в разные стороны.
Природный эксперимент в Нью-Мексико. Белые гипсовые дюны Уайт-Сэндс лежат посреди тёмной пустыни. Три вида ящериц, заселившие дюны за последние несколько тысяч лет, независимо посветлели — и у всех трёх изменился один и тот же ген пигментации, но разными мутациями. Естественный отбор трижды решил одну задачу и трижды разными способами2.
Как теперь измеряют камуфляж. Не «похоже на фон», а спектрофотометром: измеряют отражение кожи и камня, пересчитывают в сигналы рецепторов конкретного хищника и считают расстояние между ними в единицах шума рецепторов — модель Воробьёва и Осорио 1998 года. Если расстояние меньше единицы, хищник не различает; больше трёх — видит. Одна и та же ящерица получает разные оценки для змеи, птицы и человека.
Кто открыл. Что окраска рептилий и амфибий собрана из трёх слоёв клеток, работающих как одно устройство, показали в 1968 году Джозеф Багнара с коллегами: они описали «дермальную хроматофорную единицу» — пигментные клетки сверху, отражающие иридофоры в середине, чёрные меланофоры снизу — и объяснили, как перемещение гранул в одном слое меняет цвет всего пакета. А что глаз хищника, а не человека, решает, «сливается» ли животное, — мысль, к которой независимо пришли Сергей Вавилов в книге «Глаз и Солнце», разбирая устройство зрения, и Хью Котт, чей труд об адаптивной окраске 1940 года до сих пор основа предмета3.
Границы этого рассуждения.
Модель отражателя — идеализация. Настоящий иридофор не имеет ровных слоёв: кристаллы разбросаны с разбросом толщин, поэтому цвет шире и тусклее, чем у расчётного зеркала.
Спектр фона меняется за день. Под кроной свет зеленее, на открытом камне — полный солнечный; маскировка, точная утром, промахивается в полдень.
Расчёт нагрева — без потерь. Ветер и испарение уносят тепло, реальное время нагрева больше; но соотношение тёмной и светлой сохраняется.
Ящерица — не осьминог. Она перестраивает только то, что есть в коже: несколько пигментов и одну решётку. Произвольный рисунок под фон, как у головоногих, ей недоступен.
О чём спорят. Насколько изменение окраски ящериц служит маскировке, а насколько теплу и сигналам, разделить трудно: все три требования действуют одновременно на одни и те же клетки. Для хамелеонов перевес в пользу сигналов показан прямо; для прытких ящериц наших широт доля каждого вклада не измерена, и разные авторы отдают первенство то терморегуляции, то хищникам4.
Открытый вопрос. Как клетка выставляет расстояние между кристаллами с точностью в нанометры и держит его при смене температуры? Механику растяжения решётки видно под микроскопом, а молекулярный «шаг», которым клетка её регулирует, пока не найден.
Teyssier J., Saenko S. V., van der Marel D., Milinkovitch M. C. Photonic crystals cause active colour change in chameleons. Nature Communications 6:6368, 2015. ↩
Rosenblum E. B. et al. Molecular and functional basis of phenotypic convergence in white lizards at White Sands. PNAS 107:2113–2117, 2010. ↩
Bagnara J. T., Taylor J. D., Hadley M. E. The dermal chromatophore unit. Journal of Cell Biology 38:67–79, 1968; Вавилов С. И. Глаз и Солнце. М.: Наука, 1976; Cott H. B. Adaptive Coloration in Animals. Methuen, 1940. ↩
Stevens M., Merilaita S. (eds.). Animal Camouflage: Mechanisms and Function. Cambridge University Press, 2011; Vorobyev M., Osorio D. Receptor noise as a determinant of colour thresholds. Proc. R. Soc. B 265:351–358, 1998; Cuthill I. C. et al. Disruptive coloration and background pattern matching. Nature 434:72–74, 2005. ↩

 Научно-популярный туризм